|
|
 |
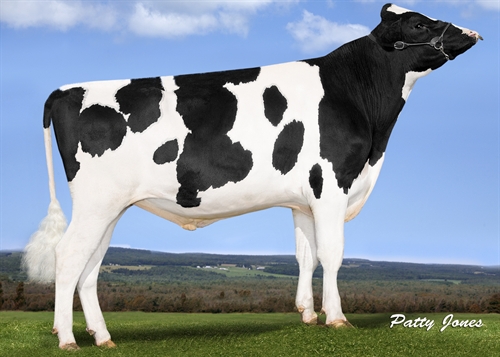
| CALBRETT SIFTER P *RC |
|
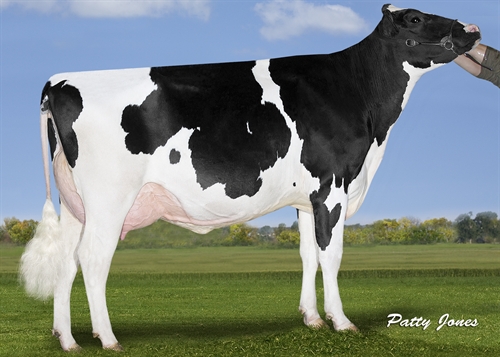
| MAPEL WOOD CGAIN LOTTO P VG-86-2YR-CAN 1* |
|
|
|
|
| STANTONS CAPITAL GAIN |
|
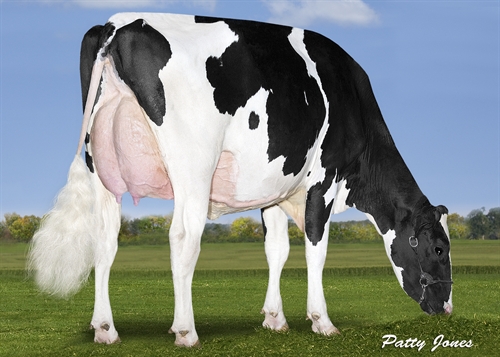
| MAPEL WOOD LADD LEAH P VG-86-2YR-CAN 5* |
|
|
|
|
| TIGER-LILY LADD P-RED |
|
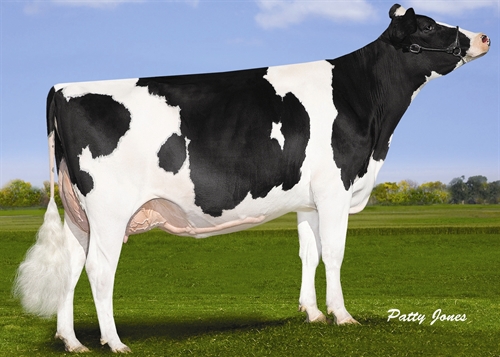
| MAPEL WOOD M O M LUCY VG-86-2YR-CAN 9* |
|
|
|
| TD RC TL TY TV 99%-I |
HH1F HH2F HH3F HH4F HH5F HH6F HCDF HMWF |
| Reg. #: HOCANM12478052 |
aAa: 234156 |
DMS: 345 |
| Født: 06/12/2016 |
Kappa Casein: |
Beta Casein: A1A2 |
|
| SEMEX MANAGEMENT TRAITS |
|
|
| Immuniteit |
96 |
|
Kalve immuniteit |
93 |
|
Robot Index |
88 |
|
| PRODUKTION |
| 475 Besætninger |
1315 Døtre |
95% skh. |
|
MACE-G / 08-26 |
|
|
Mælk lbs
-344 |
|
Fedt lbs
-4 |
|
Fedt %
+0.04 |
|
Protein lbs
-11 |
|
Protein %
0.00 |
|
| NM$ -115 |
|
CM$ -112 |
|
FM$ -119 |
|
GM$ -133 |
|
DWP$ 14 |
|
Foder Effektivitet
-52 |
|
RFI
107 |
|
Sparet foder
-202 |
|
Metan effektivitet
98 |
|
Malketid
6.64 |
|
|
Gennemsnit ydelse døtre
Mælk 25,350 lbs
Fedt 1,057 lbs
Protein 827 lbs
|
|
|
|
|
| Koens reproeffektivitet | -0.1 | |
|
|
|
|
| Kviens reproeffektivitet | 1.8 | |
|
|
|
|
| Fødselsindeks | 1.9% | 90% skh. |
|
|
|
|
| Døtre Fødselsindeks | 2.7% | 87% skh. |
|
|
| Kviens levedygtighed | -0.4 |
|
|
|
|
|
|
|
|
|
|
| EKSTERIØR |
| 270 Besætninger |
592 Døtre |
89% skh. |
|
MACE-G / 08-26 |
|
|
|
| HO Conformation Composite | 0.54 | |
|
|
|
|
|
|
|
|
|
|
|
|
|
|
| Højde |
|
|
Høj |
+1.18 |
| Styrke |
|
|
Stærk |
+0.61 |
| Krobsdybde |
|
|
Stor |
+0.73 |
| Malkepræg |
|
|
Åben |
+0.39 |
| Krydsretning |
|
|
Opsvajet |
-0.19 |
| Krydsbredde |
|
|
Bred |
+0.03 |
| Hasevinkel |
|
|
Kroget |
+0.01 |
| Hasestilling |
|
|
Parallelle |
+1.06 |
| Klovhældning |
|
|
Stejl |
+0.69 |
| Lemmer & Klove Score |
|
|
Høj |
+1.36 |
| Foryvertilhæftning |
|
|
Fast |
+0.16 |
| Bagyverhøjde |
|
|
Høj |
+0.90 |
| Bagyverbredde |
|
|
Bred |
+0.38 |
| Yverbånd |
|
|
Stærk |
+0.62 |
| Yverdybde |
|
|
Høj |
+1.58 |
| Forpatteafstand |
|
|
Tætstillede |
+0.10 |
| Pattelængde |
|
|
Korte |
-2.13 |
| Bagpatteastand |
|
|
Tætstillede |
+0.18 |
|
|
|
| |
|
|
|
|