|
|
 |
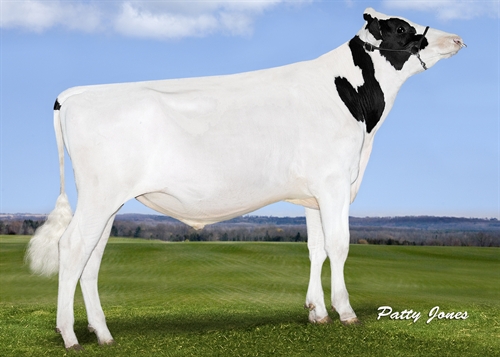
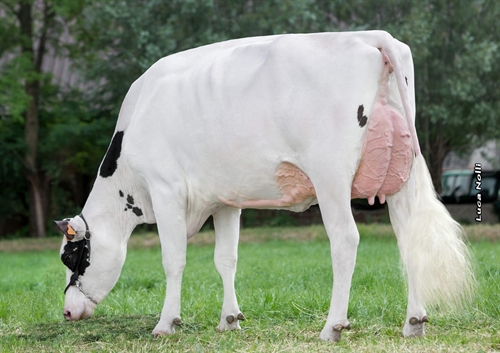
| SEAGULL-BAY SILVER |
|
| STANTONS MCCUTCHEN 1174 AGREE VG-88-4YR-CAN 17* |
|
|
|
|
| DE-SU BKM MCCUTCHEN 1174 |
|
| STANTONS OBSERVER EXTREME VG-85-2YR-CAN 11* |
|
|
|
|
| DE-SU OBSERVER |
|
| WABASH-WAY BOL ELIZABETH VG-87-2YR-USA DOM 19* |
|
|
|
| VG-CAN TD TR TL TY MWT TV 99%-I |
HH1F HH2F HH3F HH4F HH5F HH6F HCDF HMWF |
| Reg. #: HOCANM12189029 |
aAa: 324156 |
DMS: 123,126 |
| Född: 05/27/2015 |
Kappa kasein: BE |
Beta kasein: A1A1 |
|
| SEMEX MANAGEMENT TRAITS |
|
|
| Immunitet |
108 |
|
Kalv Immunitet |
102 |
|
Robot Index |
97 |
|
| PRODUKTION |
| 3289 Bes |
8891 Dttr |
97% Säkh |
|
MACE-G / 08-26 |
|
|
Mjölk pund
-1050 |
|
Fett pund
-13 |
|
Fett %
+0.12 |
|
Protein pund
-24 |
|
Protein %
+0.04 |
|
| NM$ -267 |
|
CM$ -253 |
|
FM$ -299 |
|
GM$ -282 |
|
DWP$ -76 |
|
Foderomvandling
-96 |
|
Restfoder
76 |
|
Insparat Foder
-250 |
|
Metan Effektivitet
96 |
|
Mjölkbarhet
7.03 |
|
|
Döttrars medeltal (ME)
Mjölk 24,321 pund
Fett 1,038 pund
Protein 807 pund
|
|
|
|
|
| Insem. per dräktighet Kor | -0.4 | |
|
|
|
|
| Insem. per dräktighet Kvigor | -0.3 | |
|
|
|
|
| Kalvningsegenskaper som far | 1.8% | 94% Säkh |
|
|
|
|
| Kalvningar MF | 2.0% | 92% Säkh |
|
|
|
|
|
|
|
|
|
|
|
|
| HELHETSINTRYCK |
| 2479 Bes |
6540 Dttr |
96% Säkh |
|
MACE-G / 08-26 |
|
|
|
| HO Conformation Composite | 1.05 | |
|
|
|
|
|
|
|
|
|
|
|
|
|
|
| Storlek |
|
|
lång |
+0.93 |
| Styrka |
|
|
stark |
+0.60 |
| Kroppsdjup |
|
|
hög |
+0.39 |
| Mjölkpräglad |
|
|
ej öppen |
-0.77 |
| Korslutning |
|
|
hög |
-0.12 |
| Korsbredd |
|
|
brett |
+0.15 |
| Benvinkel |
|
|
krokiga |
+0.40 |
| Ben bakifrån |
|
|
Paralella |
+1.91 |
| Kotvinkel |
|
|
brant |
+1.69 |
| Klövar & Ben |
|
|
hög |
+1.62 |
| Framjuver fäste |
|
|
bra |
+2.41 |
| Bakjuver höjd |
|
|
hög |
+1.87 |
| Bakjuver bredd |
|
|
bred |
+0.55 |
| Mittligament |
|
|
starkt |
+1.80 |
| Juverdjup |
|
|
grunt |
+3.09 |
| Spenplacering fram |
|
|
tät |
+0.86 |
| Spenlängd |
|
|
kort |
-1.70 |
| Spenplacering bak |
|
|
tät |
+1.00 |
|
|
|
| |
|
|
|
|