|
|
 |
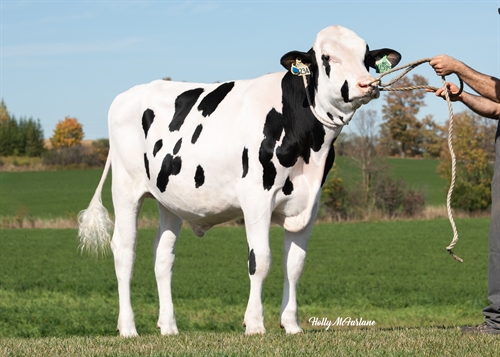
| PROGENESIS FABULOUS |
|
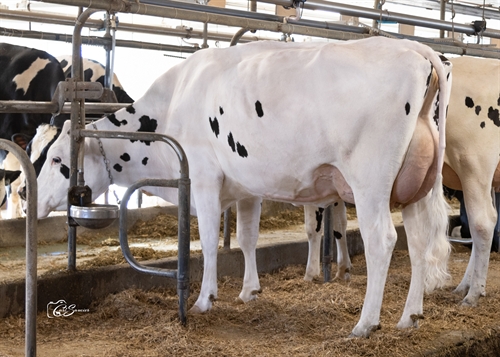
| PROGENESIS EXPRESSO PEONY 7* |
|
|
|
|
| S-S-I ERASER P EXPRESSO |
|
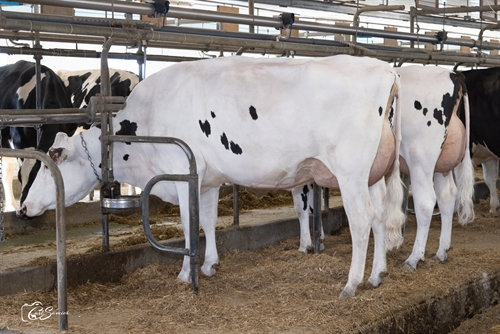
| SYNERGY RUBICON PERFECT GP-84-2YR-USA 10* |
|
|
|
|
| EDG RUBICON |
|
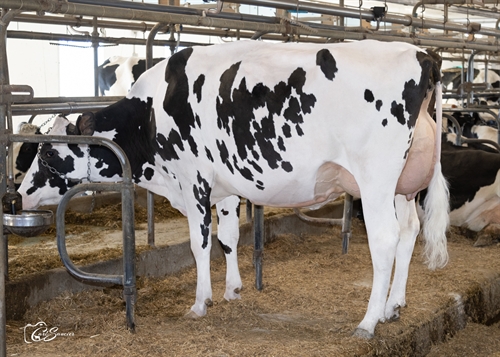
| SYNERGY UNO POT O GOLD VG-88-8YR-USA |
|
|
|
| TD TR TL TY MWT TV 99%-I |
HH1F HH2F HH3F HH4F HH5C HH6F HCDF HMWF |
| Rek #: HOCANM13227486 |
aAa: 324156 |
DMS: 561,126 |
| Syntynyt: 08/20/2018 |
Kappakaseiini: BB |
Beettakaseiini: A1A2 |
|
| SEMEX MANAGEMENT TRAITS |
|
|
| Immuunivaste |
91 |
|
Vasikan immuunivaste |
89 |
|
Robot Index |
101 |
|
| TUOTOS |
| 427 Karjoja |
756 Tytt |
92% arv.varm |
|
MACE-G / 08-26 |
|
|
Maito paunaa
1216 |
|
Rasva paunaa
42 |
|
Rasva %
-0.03 |
|
Valkuainen paunaa
40 |
|
Valkuainen %
0.00 |
|
| NM$ 365 |
|
CM$ 372 |
|
FM$ 349 |
|
GM$ 385 |
|
DWP$ 314 |
|
Rehuhyötysuhde
132 |
|
RFI
13 |
|
Rehunsäästö
-102 |
|
Metaanitehokkuus
93 |
|
Lypsynopeus
7.07 |
|
| TERVEYS JA HEDELMÄLLISYYS |
|
|
|
|
|
|
|
|
|
|
|
|
| Poikimavaikeus isänä | 1.6% | 79% arv.varm |
|
|
|
|
| Poikimavaikeus emänisänä | 1.8% | 81% arv.varm |
|
|
|
|
| Vasikkakuolleisuus isänä | 3.9% | |
|
|
|
|
| Vasikkakuolleisuus emänisänä | 3.6% | |
|
|
|
|
| RAKENNE |
| 416 Karjoja |
739 Tytt |
87% arv.varm |
|
MACE-G / 08-26 |
|
|
|
| HO Conformation Composite | 1.37 | |
|
|
|
|
|
|
|
|
|
|
|
|
|
|
| Takakorkeus |
|
|
korkea |
+1.00 |
| Vahvuus |
|
|
vahva |
+0.78 |
| Rungon syvyys |
|
|
syvä |
+0.52 |
| Lypsytyyppisyys |
|
|
hyvä |
+0.60 |
| Lantiokulma |
|
|
laskeva |
+1.27 |
| Lantion leveys |
|
|
kapea |
-0.05 |
| Kinnerkulma |
|
|
suora |
-1.15 |
| Takajalat takaa |
|
|
suorat |
+0.53 |
| Sorkkakulma |
|
|
hyvä |
+1.46 |
| Jalkarakenne |
|
|
hyvä |
+0.13 |
| Etukiinnitys |
|
|
hyvä |
+0.19 |
| Takakiinnityksen korkeus |
|
|
hyvä |
+1.12 |
| Takakiinnityksen leveys |
|
|
leveä |
+0.89 |
| Keskiside |
|
|
heikko |
-0.17 |
| Utaremuoto |
|
|
laaka |
+0.06 |
| Etuvedinten sijainti |
|
|
kaukana |
-0.60 |
| Etuvedinten pituus |
|
|
pitkät |
+0.80 |
| Takavedinten sijainti |
|
|
kaukana |
-0.32 |
|
|
|
| |
|
|
|
|