|
|
 |
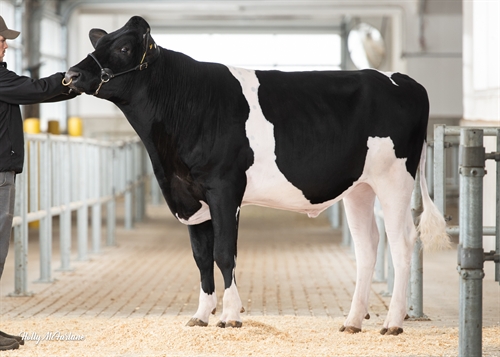
| T-SPRUCE G FROST BITE |
|
| SANDY-VALLEY TANYA GP-81-2YR-USA |
|
|
|
|
| SANDY-VALLEY R CONWAY |
|
| SANDY-VALLEY LEGCY PIXEL GP-80-3YR-USA |
|
|
|
|
| PINE-TREE CW LEGACY |
|
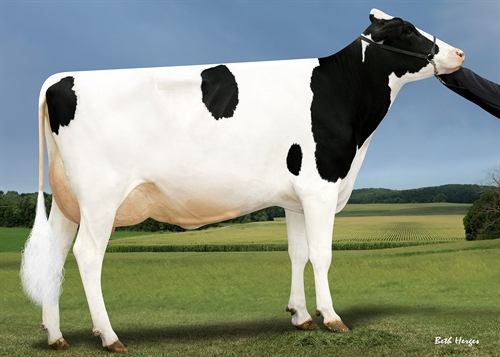
| SANDY-VALLEY RSLV PUZZLE EX-90-3YR-USA |
|
|
|
| TD TR TL TY TV 99%-I |
HH1F HH2F HH3F HH4F HH5F HH6F HCDF HMWF |
| Rek #: HO840M3250768454 |
aAa: 243165 |
DMS: 135,345 |
| Syntynyt: 09/06/2022 |
Kappakaseiini: BB |
Beettakaseiini: A2A2 |
|
| SEMEX MANAGEMENT TRAITS |
|
|
| Immuunivaste |
106 |
|
Vasikan immuunivaste |
103 |
|
Robot Index |
98 |
|
| TUOTOS |
| G Karjoja |
G Tytt |
82% arv.varm |
|
CDCB-G / 08-26 |
|
|
Maito paunaa
132 |
|
Rasva paunaa
80 |
|
Rasva %
+0.28 |
|
Valkuainen paunaa
35 |
|
Valkuainen %
+0.12 |
|
| NM$ 635 |
|
CM$ 678 |
|
FM$ 531 |
|
GM$ 670 |
|
DWP$ 722 |
|
Rehuhyötysuhde
216 |
|
RFI
94 |
|
Rehunsäästö
52 |
|
Metaanitehokkuus
100 |
|
Lypsynopeus
7.02 |
|
| TERVEYS JA HEDELMÄLLISYYS |
|
|
|
|
|
|
|
|
|
|
|
|
| Poikimavaikeus isänä | 1.5% | 85% arv.varm |
|
|
|
|
| Poikimavaikeus emänisänä | 2.0% | 71% arv.varm |
|
|
|
|
| Vasikkakuolleisuus isänä | 4.0% | |
|
|
|
|
| Vasikkakuolleisuus emänisänä | 4.0% | |
|
|
|
|
| RAKENNE |
| G Karjoja |
G Tytt |
81% arv.varm |
|
HAUSA-G / 08-26 |
|
|
|
| HO Conformation Composite | 1.32 | |
|
|
|
|
|
|
|
|
|
|
|
|
|
|
| Takakorkeus |
|
|
matala |
-0.36 |
| Vahvuus |
|
|
hento |
-0.56 |
| Rungon syvyys |
|
|
huono |
-0.52 |
| Lypsytyyppisyys |
|
|
hyvä |
+0.68 |
| Lantiokulma |
|
|
laskeva |
+0.49 |
| Lantion leveys |
|
|
kapea |
-0.27 |
| Kinnerkulma |
|
|
kiverä |
+0.88 |
| Takajalat takaa |
|
|
pihtiset |
-0.72 |
| Sorkkakulma |
|
|
huono |
-0.20 |
| Jalkarakenne |
|
|
huono |
-0.13 |
| Etukiinnitys |
|
|
hyvä |
+0.60 |
| Takakiinnityksen korkeus |
|
|
hyvä |
+0.84 |
| Takakiinnityksen leveys |
|
|
leveä |
+0.58 |
| Keskiside |
|
|
heikko |
-0.41 |
| Utaremuoto |
|
|
syvä |
-0.13 |
| Etuvedinten sijainti |
|
|
lähellä |
+0.19 |
| Etuvedinten pituus |
|
|
lyhyet |
-0.29 |
| Takavedinten sijainti |
|
|
kaukana |
-0.05 |
|
|
|
| |
|
|
|
|