|
|
 |
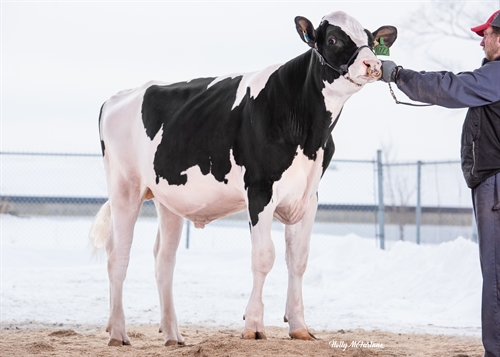
| CLAYNOOK CASPER |
|
| CLAYNOOK FRAZZLE DUKE EX-90-5YR-CAN 3* |
|
|
|
|
| S-S-I MONTROSS DUKE |
|
| CLAYNOOK FRISKY DOORSOPEN EX-92-5YR-CAN 10* |
|
|
|
|
| LADYS-MANOR DOORSOPEN |
|
| VIEW-HOME MCC FOUND VG-88-6YR-CAN 12* |
|
|
|
| TD TR TL TY MWT TV 99%-I |
HH1F HH2F HH3F HH4F HH5F HH6F HCDF HMWF |
| Reg. #: HOCANM13281241 |
aAa: 243156 |
DMS: 135,345 |
| Geboren: 11/01/2018 |
Kappa Casein: AB |
Beta Casein: A1A2 |
|
| SEMEX MANAGEMENT TRAITS |
|
|
| Immuniteit |
100 |
|
Kalf immuniteit |
100 |
|
Robot Index |
97 |
|
| PRODUCTIE |
| 192 Bedrijven |
486 Dochters |
92% Bet |
|
MACE-G / 08-26 |
|
|
Melk lbs
639 |
|
Vet lbs
23 |
|
Vet %
-0.01 |
|
Eiwit lbs
28 |
|
Eiwit %
+0.03 |
|
| NM$ 113 |
|
CM$ 125 |
|
FM$ 85 |
|
GM$ 137 |
|
DWP$ 119 |
|
Voerefficiëntie
86 |
|
RFI
101 |
|
Voerbesparing
-34 |
|
Methaan Efficiëntie
99 |
|
Melksnelheid
7.12 |
|
| GEZONDHEID EN VRUCHTBAARHEID |
|
|
|
|
|
|
|
|
|
|
| Dochtervruchtbaarheid | -0.9 |
|
|
| Geboorte gemak | 1.6% | 75% Bet |
|
|
|
|
| Afkalfgemak dochters | 2.2% | 70% Bet |
|
|
| Levensvatbaarheid Vaarskalveren | -0.7 |
|
|
|
|
|
|
| Doodgeboren kalveren dochters | 4.4% | |
|
|
|
|
| TOT. EXTERIEUR |
| 150 Bedrijven |
317 Dochters |
88% Bet |
|
MACE-G / 08-26 |
|
|
|
| HO Conformation Composite | -1.27 | |
|
|
|
|
|
|
|
|
|
|
|
|
|
|
| Hoogtemaat |
|
|
Groot |
+1.58 |
| Kracht |
|
|
Weinig |
-0.13 |
| Inhoud |
|
|
Veel |
+0.58 |
| Melktype |
|
|
Open |
+2.02 |
| Kruisligging |
|
|
Hellend |
+0.06 |
| Kruisbreedte |
|
|
Breed |
+1.31 |
| Achterbenen zijaanzicht |
|
|
Krom |
+1.55 |
| Achterbenen achteraanzicht |
|
|
Hakkig |
-1.36 |
| Klauwhoek |
|
|
Laag |
-0.55 |
| Benen totaal |
|
|
Laag |
-0.19 |
| Vooruieraanhechting |
|
|
Sterk |
+1.56 |
| Achteruierhoogte |
|
|
Hoog |
+2.15 |
| Achteruierbreedte |
|
|
Breed |
+2.37 |
| Ophangband |
|
|
Sterk |
+2.65 |
| Uierdiepte |
|
|
Ondiep |
+1.16 |
| Voorspeenplaatsing |
|
|
Nauw |
+2.16 |
| Voorspeenlengte |
|
|
Kort |
-1.70 |
| Achterspeenplaatsing |
|
|
Nauw |
+3.19 |
|
|
|
| |
|
|
|
|